Mostrando entradas con la etiqueta biología molecular. Mostrar todas las entradas

Los siRNA contra el Ébola


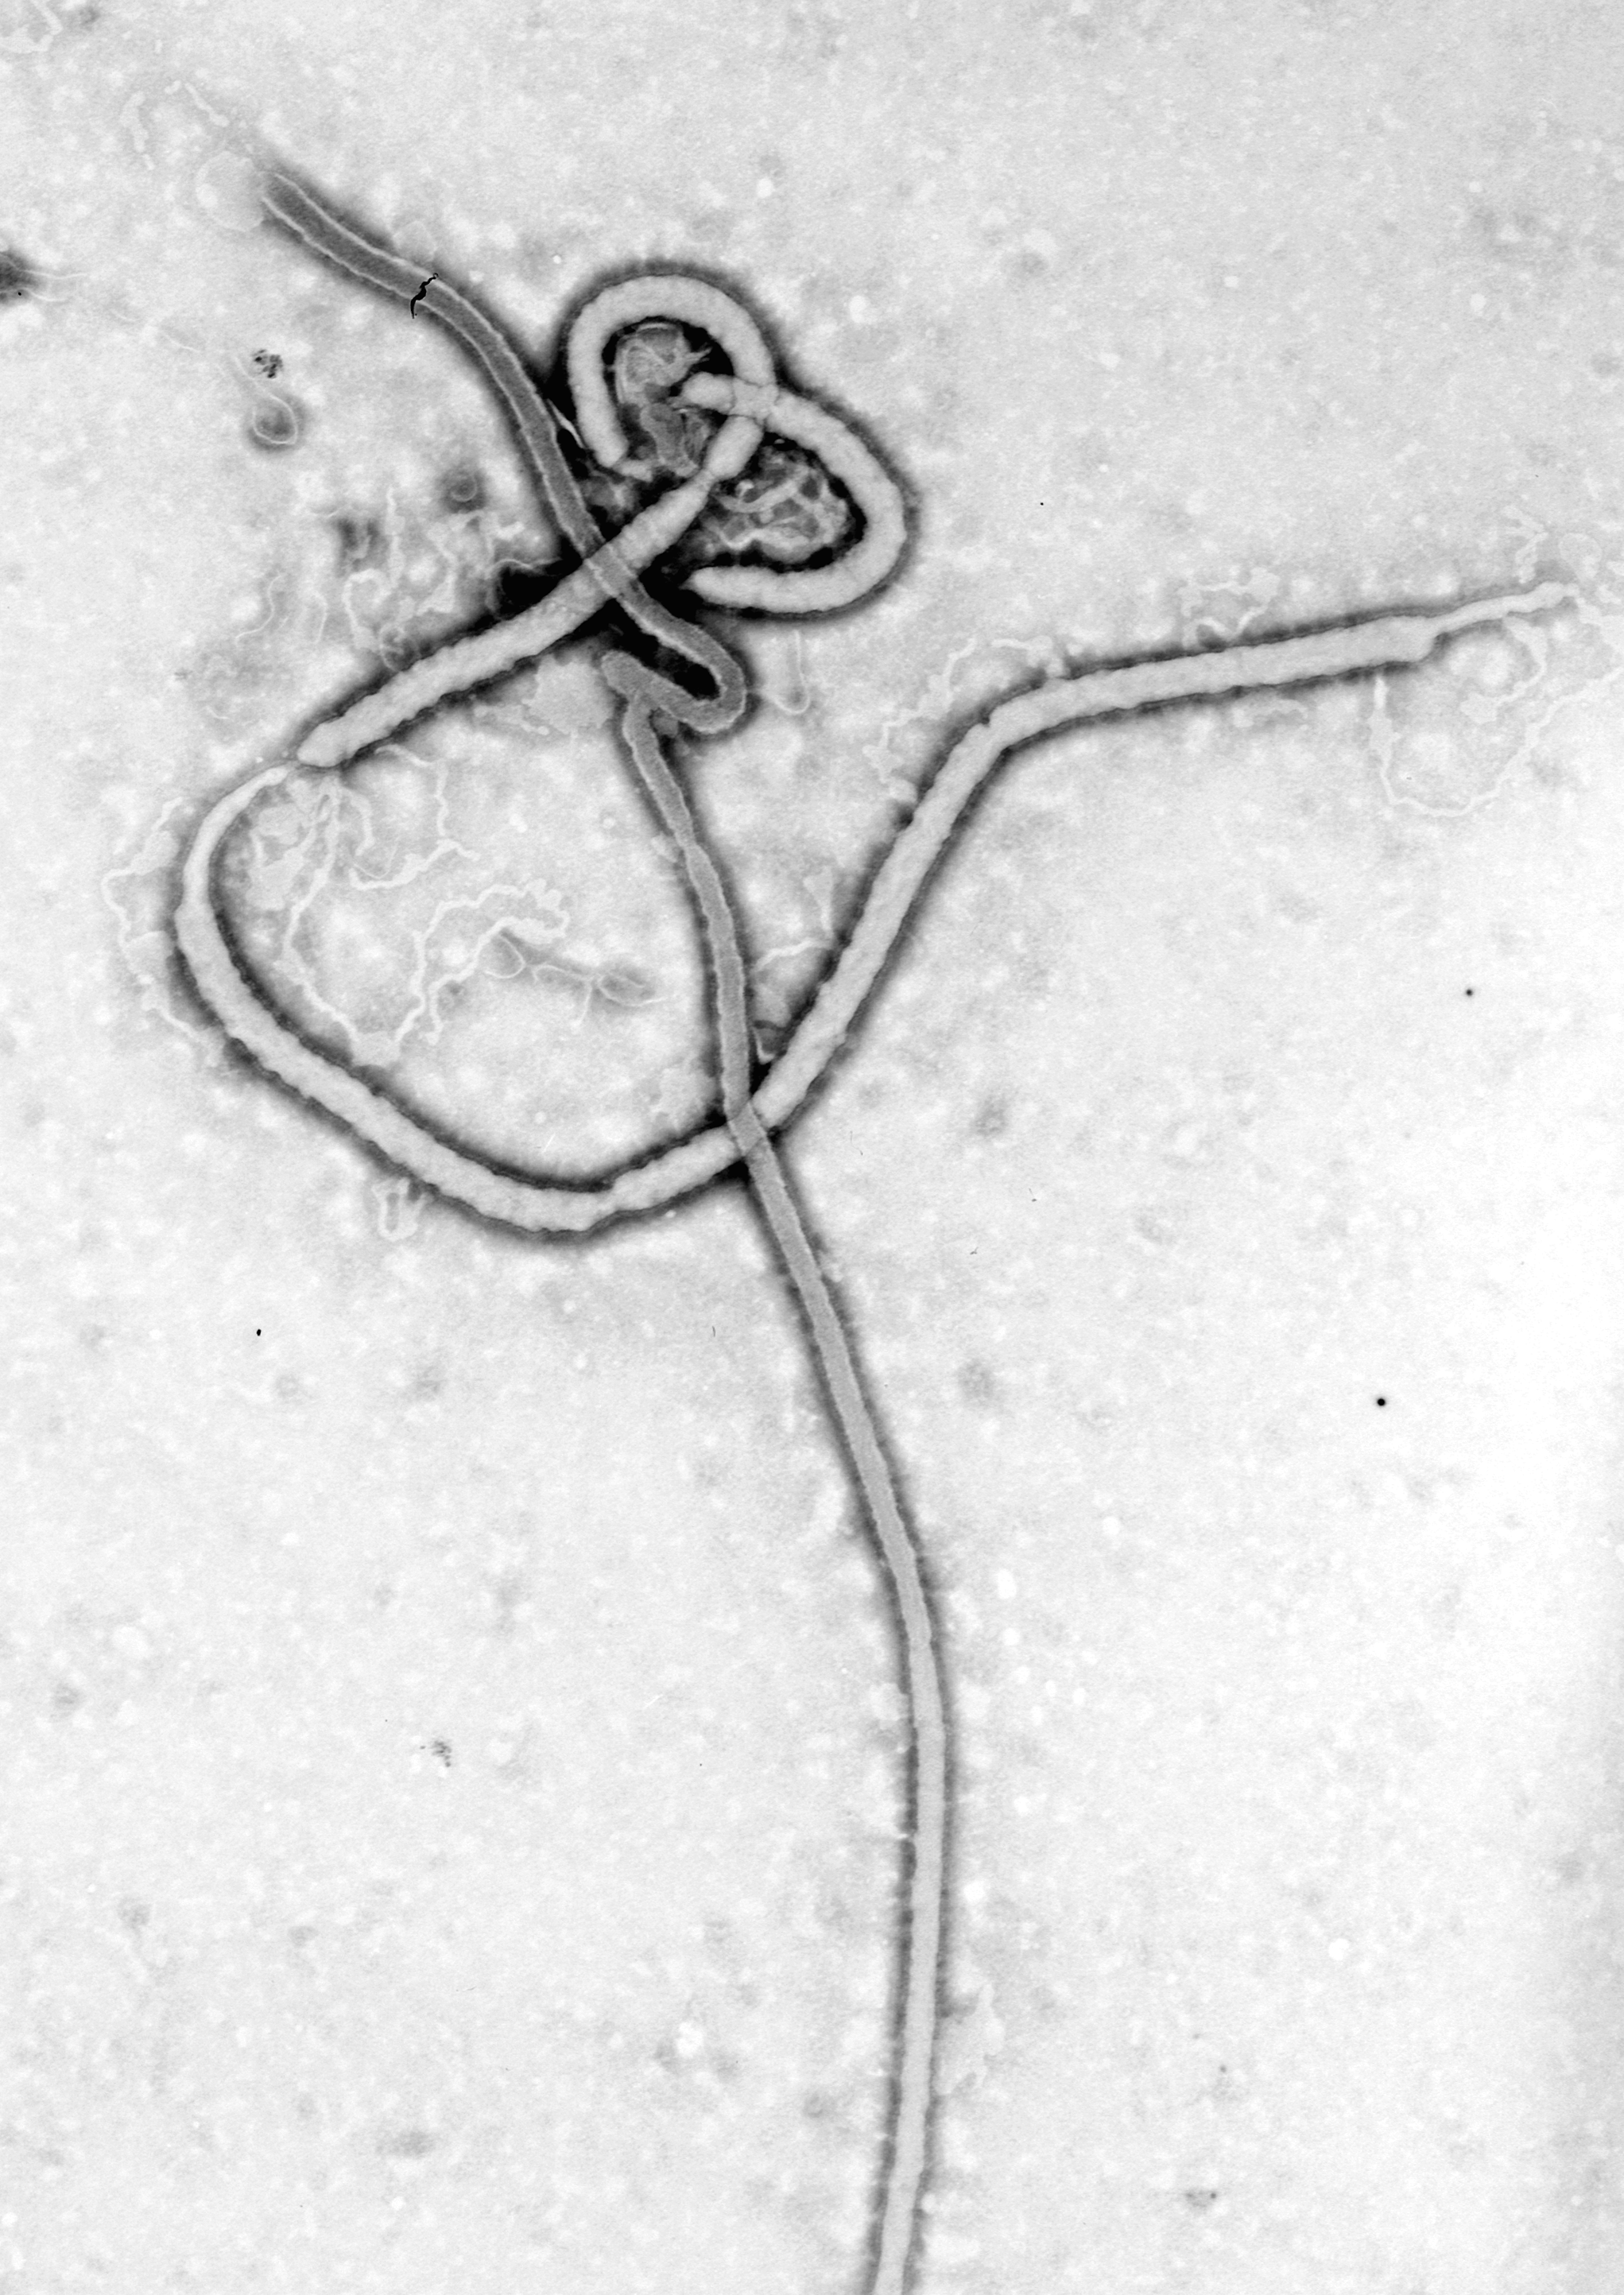
El Ébola, la enfermedad infecciosa más violenta y letal de todas y reina de las fiebres hemorrágicas (como el dengue), es una grave amenaza a la salud pública, porque no tiene cura y la tasa de mortalidad es superior al 80%, y también la paz mundial, ya que está clasificada como de grado A en las armas bioterroristas. Esta terrible enfermedad fue descrita por primera vez en 1976 en una misión al río Ébola en Zaire (actualmente, República del Congo). Los pacientes infectados con este virus tienen una muerte sumamente dolorosa ya que los órganos literalmente se te derriten. La transmisión de este virus es sólo por contacto directo con la sangre de un infectado, y a pesar de ser sumamente infecciosa, en su estado de incubación, no lo es. No se han reportado casos de contagio por vía aérea como en los virus de la gripe y también es altamente letal en otros primates.

El viernes, Geisbert et al. publicó en la revista The Lancet una prometedora cura para esta terrible enfermedad y nuevas estrategias para el tratamiento de otras enfermedades virales. ¿Qué fue lo que hicieron?. Simplemente usaron pequeños ARN de interferencia (siRNA) los cuales son pequeñas secuencias de ARN de unos 21 a 23 nucleótidos de largo que se unen a secuencias complementarias en el ARN mensajero, bloqueando su expresión a proteína mediante la formación de un complejo proteíco (RISC) donde la proteína DICER es la responsable del corte y posterior degradación del ARNm.

Geisbert diseñó una combinación de siRNA para atacar el ARNm de las siguientes proteínas virales: la proteína L de la ARN polimerasa del virus del Ébola y las proteína virales 24 y 35; luego la puso dentro de una cápsula formada por partículas lipídicas (SNALPs) para que pudieran ser administradas a los infectados y puedan ser asimiladas por las células para liberar su contenido dentro de ellas y empiecen a realizar su función de silenciar la expresión de la ARN polimerasa del virus y otras proteínas importantes en la diseminación del virus y el desarrollo de la fiebre hemorrágica.

Se hicieron los experimentos en 7 macacos. Al primer grupo de 3 individuos se les dio una dosis de 2mg/kg vía intravenosa después de 30 minutos y a los 1, 3 y 5 días de haber sido infectados con el virus del Ébola y al segundo grupo de 4 individuos se les dio la misma dosis pero a los 30 minutos y a los 1, 2, 3 ,4, 5, 6 días de haber sido infectados. Los resultados fueron muy alentadores, 6 macacos soportaron el tratamiento y quedaron protegidos contra el virus del Ébola, solo un macaco —perteneciente al primer grupo— no sobrevivió. A pesar de la mayor dosis en el segundo grupo, no hubo efectos secundarios perjudiciales en los macacos, las enzimas hepáticas que se cree son perjudicadas durante la infección toleraron bien el tratamiento.

Estos resultados son muy alentadores y muestran las potencialidades del uso de los siRNA para el tratamiento de una gran variedad de virus que son de preocupación para la salud pública (gripes, dengue, hepatitis, VIH, Herpes, etc.); además, nos dan una nueva forma de administrar los agentes terapéuticos vía bolsas lipídicas que pueden difundir fácilmente por la membrana celular. Ahora vendrán los primeros ensayos clínicos en pacientes humanos infectados con el Ébola.

Referencia:

ResearchBlogging.orgGeisbert, T, & et al. (2010). Postexposure protection of non-human primates against a lethal Ebola virus challenge with RNA interference: a proof-of-concept study The Lancet, 375 (9729), 1896-1905 : 10.1016/S0140-6736(10)60357-1

Dia de la Hemofilia

Hoy 17 de abril se celebra el día mundial de la Hemofilia.

La hemofilia es una deficiencia genética hereditaria. Los varones heredan la enfermedad de sus madres, aunque ellas no la padecen y en muchas ocasiones no saben que son portadoras. Se caracteriza por la aparición de hemorragias internas y externas debido a la deficiencia total o parcial de una proteína coagulante llamada globulina antihemofílica (factor de coagulación).

“Cuando hay carencia o déficit de algún factor de coagulación, la sangre tarda más tiempo en formar el coágulo y, aunque llegue a formarse, no es consistente y no se forma un buen tapón para detener la hemorragia. Ese es el mayor problema de los hemofílicos”, sostiene la doctora Gloria Chumpitaz Anchiraico, Jefa de la Unidad de Hemofilia del Hospital Edgardo Rebagliati Martins

Pero, ¿sabe qué es la hemofilia? Cuando una persona se hace una herida, sangra porque se corta un capilar o un vaso sanguíneo. En condiciones normales el organismo pone en acción sus mecanismos de coagulación y la herida se cierra pronto. En la hemofilia, hay una deficiencia total o parcial del factor de coagulación, por lo que hasta pequeñas heridas pueden originar abundantes y hasta mortales pérdidas de sangre.

El genoma Humano en 3D

Los libros nos muestran la conformación estructural de nuestro genoma dividido en 23 pares de cromosomas, pero, en realidad, esta conformación sólo se da en un breve momento del ciclo celular, el resto del tiempo, el ADN está todo revuelto dentro del núcleo de la célula, altamente empaquetado, para que los casi dos metros que mide nuestro genoma, puedan caber en un espacio tan pequeño.

ResearchBlogging.orgPero, como hacen los genes para poder ser expresados en toda esta maraña altamente “desordenada”. La verdad es que, si bien parece que la organización del genoma es muy desordenada, no lo es. Por esta razón, conocer la organización de nuestros cromosomas en el núcleo es crítico para determinar las interacciones que hay entre los distintos genes ubicados en los distintos cromosomas, y los mecanismos de regulación de la expresión genética.

Lieberman-Aiden et. al desarrollaron un método para determinar que locus estaban espacialmente juntos en la configuración tridimensional de nuestro genoma. El método se llama Hi-C que consiste, básicamente, en ligar los locus cercanos, cortarlos, purificarlos y secuenciarlos paralelamente.

Hi-CLos genes cercanos se unen usando formaldehído, el cual actúa a manera de goma, luego se cortan usando enzimas de restricción. Este corte deja pares de genes unidos y portando extremos pegajosos producto de la enzima de restricción, los cuales son usados para unirlos a sondas marcadas con biotina. Luego, los extremos son vueltos a unir en medios extremadamente diluidos, formándose una especie de anillos y portando un sitio de corte, justo en el sitio marcado con biotina, para que otra enzima de restricción abra la cadena. Luego estas regiones marcadas son purificadas y capturadas usando perlas con estreptavidina para luego ser secuenciados paralelamente y comparados con secuencias ya conocidas para determinar a que gen y cromosoma corresponden.

Luego, usando los datos de que locus están unidos espacialmente y a que cromosomas corresponden, se hizo una matriz de emparejamiento, de 1Mb de resolución, con ayuda de un programa informático. Se encontró una clara relación entre las distancias genéticas entre los locus (Pb de distancia entre un locus y otro dentro de un mismo cromosoma) con la probabilidad de estar juntos tridimensionalmente. A mayor distancia, menor probabilidad.

matrixLas matrices de contacto fueron reproducibles, tanto con la misma enzima de restricción (HindIII) como con otra enzima (NcoII). Se observa, claramente, que los locus más cercanos están más en contacto que aquellos que están más distantes, tomando como ejemplo el cromosoma 14.

Las probabilidades de contacto de locus intracromosómicos son mayores que los contactos intercromosómicos, aún así, la distancia entre los locus sea de 200Mb. En cuanto a los cromosomas más pequeños pero ricos en genes, (cromosomas 16, 17, 18, 19, 20, 21 y 22) interactúan más veces entre ellos, que con los más grandes y con menor densidad génica.

probability_contact1 Número de contactos intercromosomales cuantificados por pares (Observados/Esperados; 0.5 a 2.0). Los puntos rojos quiere decir que hay más contactos observados que esperados y los puntos azules que hay menos observados que esperados.

Se observó que las matrices de contacto adquirían un patrón cuadriculado y se distinguía claramente unos compartimientos. Gracias a esto se pudo hacer una aproximación a la forma de organización del genoma. Esta forma es increíble y extremadamente compleja, no se forma ningún tipo de nudo, no se entrelaza en ningún momento, como si fuera una pasta muy densa donde podemos coger uno de los fideos y estirarlos. Los fideos nunca se harán un nudo o entrelazarán con otros fideos. En términos matemáticos, la forma tridimensional del genoma es similar a la curva de Hilbert pero en tres dimensiones. El genoma se organiza de manera continua, sin entrelazarse o formarse nudos, lo que permite plegar y desplegar cualquier región del genoma de forma sencilla.

fractal_globuleArquitectura del genoma en tres escalas. Todas tienen el mismo patrón, pero uno dentro del otro (fractal). El primer globulo fractal, de unas cuantas Mb, pasa a formar monómeros para una segunda forma globular fractal, esta vez a nivel cromosómico, y esta, a su vez, forma monómeros de una tercera forma globular fractal, a nivel genómico, formando la estructura tridimensional del genoma.

Esta forma es solo un modelo, pero que puede responder muchas de las preguntas, sobre todo a como se expresan los genes si se encuentran altamente empaquetados. Este modelo permite que los genes se desplieguen y plieguen sin problemas ya que nunca se enredarán o se formarán nudos. Además, permite que los locus que están cerca tridimensionalmente puedan agruparse en sectores espaciales, las regiones azules se encuentran más distantes y las regiones rojas más cercanas. Sin dudas, este descubrimiento será de mucha importancia para entender como se regulan los genes, como interactúan con los potenciadores, silenciadores, componentes epigenéticos, factores de transcripción, etc.

Lieberman-Aiden, E., van Berkum, N., Williams, L., Imakaev, M., Ragoczy, T., Telling, A., Amit, I., Lajoie, B., Sabo, P., Dorschner, M., Sandstrom, R., Bernstein, B., Bender, M., Groudine, M., Gnirke, A., Stamatoyannopoulos, J., Mirny, L., Lander, E., & Dekker, J. (2009). Comprehensive Mapping of Long-Range Interactions Reveals Folding Principles of the Human Genome Science, 326 (5950), 289-293 DOI: 10.1126/science.1181369

¿Como se detecta las proteinas celulares de los virus?


"RIG-I es la primera molécula en la respuesta inmune para detectar el ARN viral", dijo Tu Myong, autor principal del estudio y profesor del's Instituto de Biología Genómica. A diferencia de la mayoría de las otras proteínas conocidas para detectar infecciones virales en las células inmunitarias especializadas, RIG-I es activa en cada tipo de célula en el cuerpo.

La proteína RIG-I tiene dos partes principales: la contratación caspasa-dominios (CARDS) y un dominio ATPasa que consume ATP, la molécula de combustible celular.

Estudios anteriores habían mostrado que la tarjeta dominios en realidad inhiben la actividad de RIG-I, cuando el virus no está presente, pero son vitales para la voz de alarma y activar una respuesta inmune cuando un determinado tipo de virus ha sido detectado.

Otros estudios han encontrado que RIG-I se reconoce un aspecto importante de RNAs virales que falta de la mayoría de los humanos RNAs. Esta característica, un "trifosfato" etiqueta en un extremo, los "cinco principales" (5 ') final, de ARN viral, viral es una huella digital que cuenta RIG-I que algo está mal. La detección de esta etiqueta se inicia una cascada de reacciones que permite RIG-I de la emisión de un mensaje a otros componentes celulares, y, en última instancia a otras células.

Los investigadores también sabían que RIG-I se activa normalmente en presencia de double-stranded RNA, no el único-ARN encontrados varados en la mayoría de las células animales.

A principios de la investigación también ha demostrado que la central ATPasa de dominio es fundamental para la función de la molécula. Una sola mutación en esta región se apaga por completo su actividad.

"Sabíamos que la tarjeta de dominio fue responsable de la transmisión de la señalización antivirales", dijo Myong. "Y sabíamos que la forma en que el 5'-trifosfato etiqueta sea detectado. Pero sigue siendo una gran pregunta acerca de la ATPasa de dominio: Es el uso de ATP para hacer algo - pero ¿qué?

Para resolver este misterio, los investigadores utilizaron una técnica denominada "inducida por la proteína fluorescente mejora." Este método hace uso de un colorante fluorescente que, cuando está conectado a una región específica de una molécula de ARN, como, brilla con mayor o menor intensidad dependiendo de su proximidad a una proteína que está interactuando con la molécula.

Usando esta técnica, los investigadores encontraron que la proteína RIG-I se mueve hacia adelante y hacia atrás (translocates) selectivamente en double-stranded RNA, y que esta actividad es un gran estímulo en presencia de los 5'-trifosfato.

Al exigir la 5'-trifosfato y el double-stranded RNA para su funcionamiento, la proteína RIG-I es capaz de detectar con gran precisión un virus invasor, ha dicho.

La mayoría tienen su celular RNAs trifosfato colas bobbed, limitado o modificado antes de circular en el citosol de la célula, dijo. "Así que esto es una poderosa manera de distinguir ARN viral de ARN celular."

Antes de este estudio, los investigadores no sabían si RIG-sentí tanto el double-stranded RNA y el 5'-trifosfato por separado, o en forma integrada, dice Myong.

"Nuestro trabajo llena el vacío", dijo. "Se demuestra que lo hace tanto de manera integrada".

La financiación de esta investigación fue proporcionado por el Instituto Nacional de Ciencias Médicas General y la National Science Foundation.